热休克蛋白/分子伴侣抗体
HSP70 和 HSP90 是在正常条件下组成性表达的分子伴侣,用于维持蛋白质稳态,并在环境应激时被诱导表达。HSP70 和 HSP90 与未折叠蛋白相互作用,防止不可逆的聚集,并以 ATP 依赖的方式催化其底物的重新折叠。
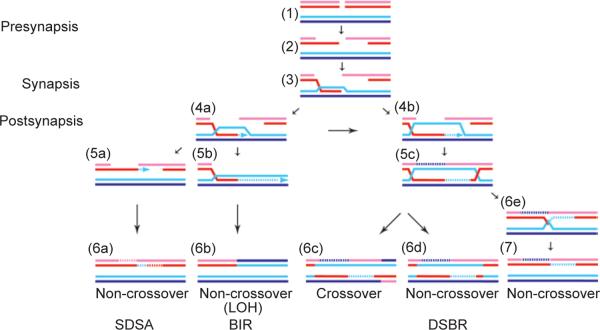
DNA 双链断裂(DSB)是一种潜在的危险损伤,可由电离辐射(IR)、拟辐射化学物质或 DNA 复制抑制剂诱导。细胞通过两条不同但部分重叠的信号通路识别和修复 DSB:非同源末端连接(NHEJ)和同源重组(HR)。在 S 期或 G2 期产生的 DSB 通过 HR 进行修复,以复制的姐妹染色单体作为修复模板。ATM 响应暴露的 DNA DSB,通过在 Ser1981 位点的自磷酸化而被激活。ATM 调控对 DNA 损伤的多种反应,包括对 HR 因子的调控。Rad51 重组酶聚合并沿单链 DNA 形成丝状结构,在包括 Rad54 和 BRCA2 在内的辅助蛋白帮助下介导 HR。BRCA2 已被证明是 Rad51 定位于 DSB 位点所必需的,缺乏 BRCA1 和 BRCA2 的细胞无法通过 HR 修复 DSB。NBS1 对 HR 至关重要,需要 CDK 依赖性地与 CtIP 结合,随后由 ATM 在 Ser278 和 Ser343 位点进行磷酸化。
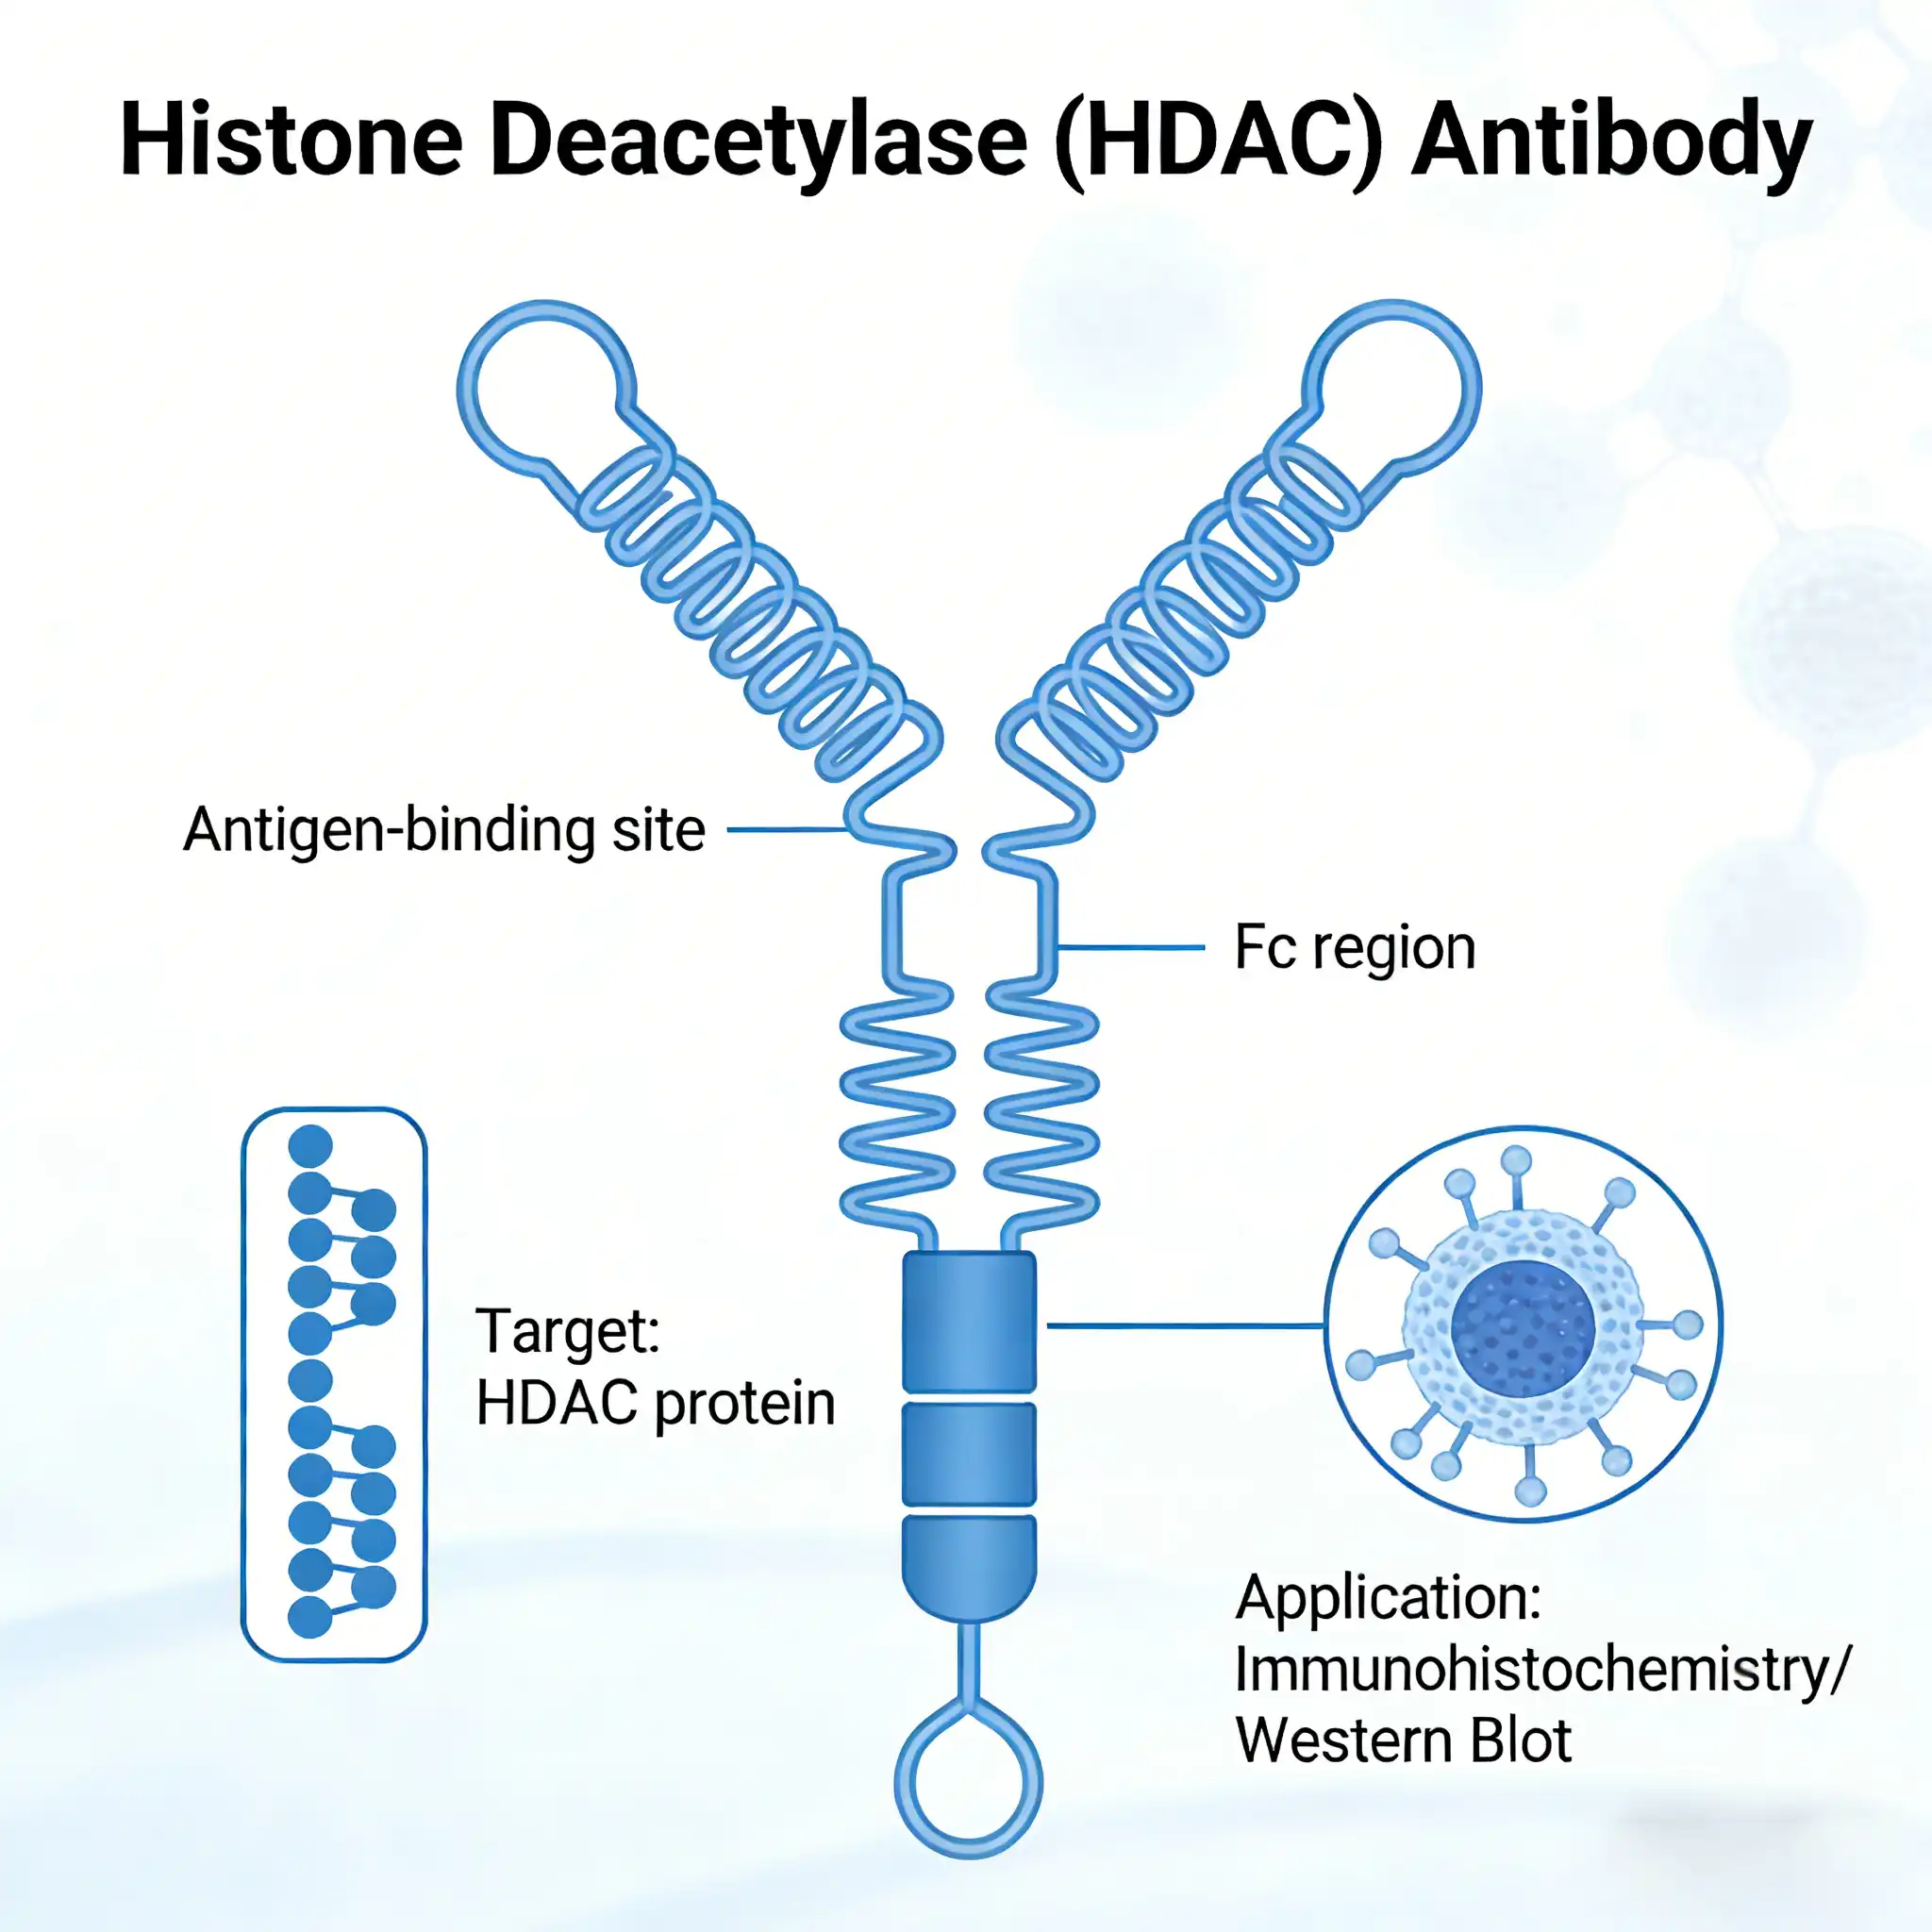
组蛋白尾部的乙酰化使染色质呈现"开放"构象,从而增加转录因子对 DNA 的可及性。组蛋白乙酰转移酶(HAT)及其大型多蛋白复合物的鉴定,为理解这些酶如何调控转录提供了重要的见解。HAT 复合物与序列特异性激活蛋白相互作用以靶向特定基因。除组蛋白外,HAT 还可以乙酰化非组蛋白,提示这些酶具有多种作用。相反,组蛋白去乙酰化促进"闭合"的染色质构象,通常导致基因活性的抑制。哺乳动物组蛋白去乙酰化酶可根据其与各种酵母去乙酰化酶的相似性分为三类。I 类蛋白(HDAC1、2、3 和 8)与酵母 Rpd3 样蛋白相关,II 类蛋白(HDAC4、5、6、7、9 和 10)与酵母 Hda1 样蛋白相关,III 类蛋白与酵母 Sir2 蛋白相关。HDAC 活性抑制剂目前正被作为潜在的抗癌治疗药物进行探索。