这篇综述是2026年发表于 Nature Reviews Drug Discovery 的权威文章,题为《癌症中的自噬调控》(Autophagy modulation in cancer),由 Emma Guilbaud、Kevin M. Ryan、Douglas R. Green 和 Lorenzo Galluzzi 共同撰写。
文章的核心前提是:自噬在癌症发生发展的不同阶段具有截然相反的作用:
在正常组织中:自噬总体上具有维持细胞稳态和抑制恶性转化的作用;而在已经形成的肿瘤中:自噬通常可帮助肿瘤细胞适应营养缺乏、缺氧和治疗压力,从而支持肿瘤进展和治疗抵抗。但这一作用并非绝对,而是具有显著的情境依赖性。
在免疫层面:自噬对肿瘤免疫监视的影响高度依赖情境,既可抑制也可促进抗肿瘤免疫。
因此,文章强调:不存在"一刀切"的自噬调控策略,必须根据疾病阶段、肿瘤类型和微环境特征来设计干预方案。
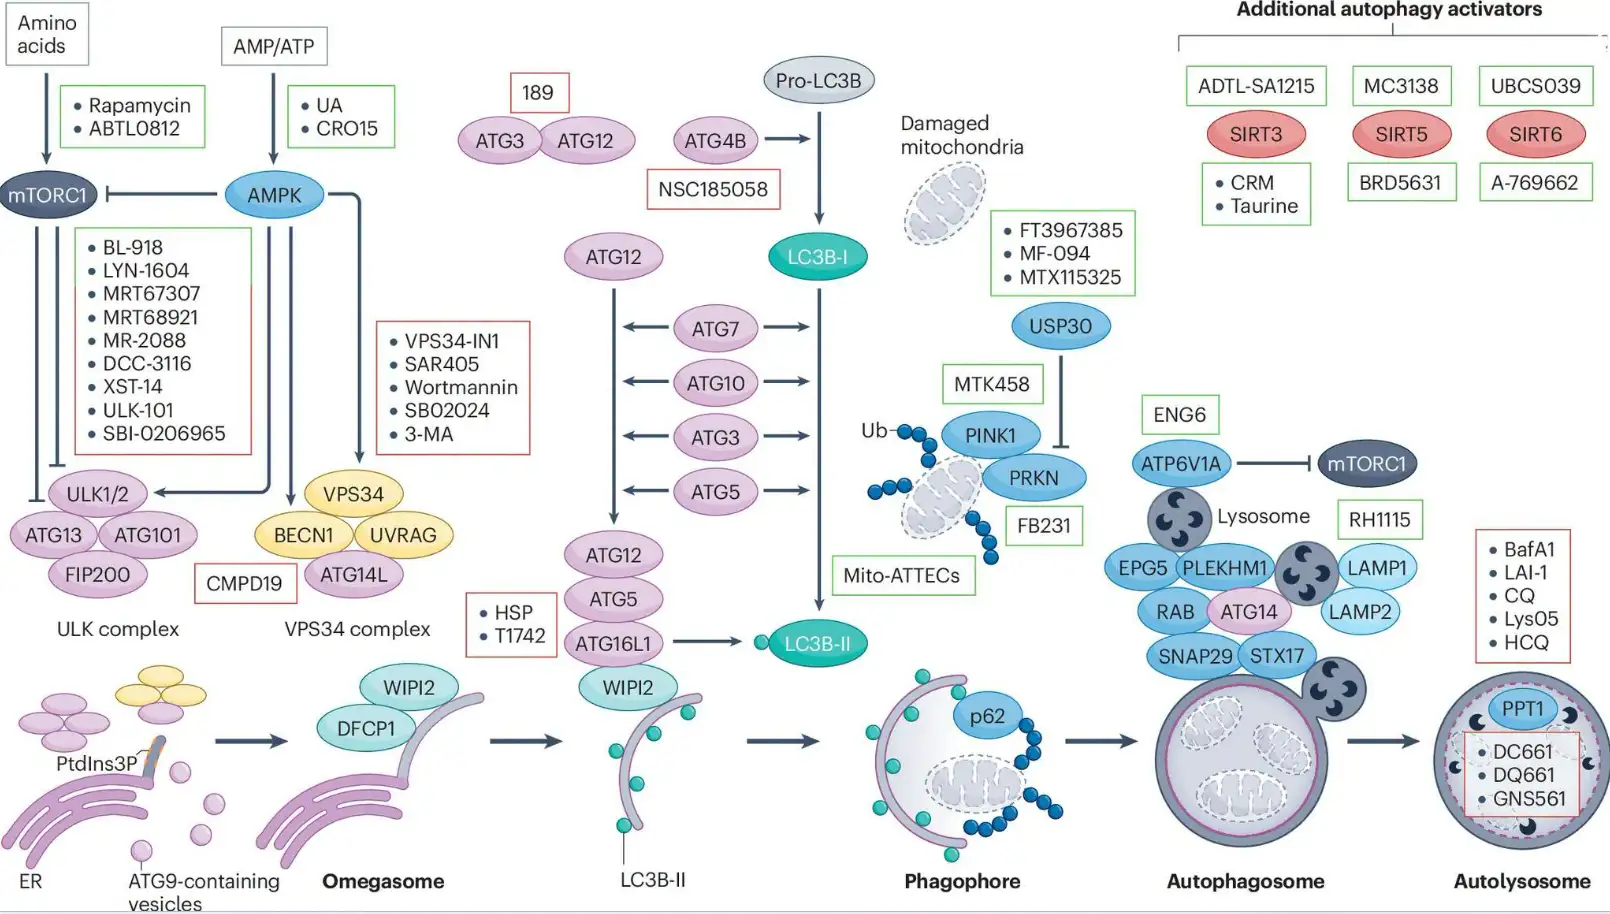
文章系统梳理了自噬的核心调控通路:
1. 启动阶段(Initiation):
(1) mTORC1是自噬的主要负调控因子,感知溶酶体氨基酸水平,通过磷酸化抑制 ULK1/2和 ATG13。(2) AMPK在能量不足(AMP/ATP升高)时被激活,通过抑制mTORC1并调控ULK1等自噬起始相关因子的磷酸化,促进自噬启动。
(3) VPS34复合物(含 BECN1、UVRAG、ATG14L)生成 PtdIns3P,驱动吞噬泡(phagophore)从 ATG9囊泡扩张。
2. 延伸与闭合阶段(Elongation & Closure):
两个类泛素化系统至关重要:
(1)ATG12‑ATG5‑ATG16L1复合物。
(2)LC3(MAP1LC3)的脂化(LC3‑I→ LC3‑II),LC3家族蛋白经ATG4B加工后,通过ATG7和ATG3等介导的类泛素化反应完成脂化,形成LC3‑II并结合自噬膜。脂化LC3(LC3‑II)通过与p62/SQSTM1等自噬受体结合,参与泛素化货物的选择性识别和募集。
3. 成熟与降解阶段(Maturation & Degradation):
(1)自噬体与溶酶体融合形成自噬溶酶体(autolysosome),依赖 SNARE蛋白(STX17、SNAP29)、RAB GTPase(RAB7A)和拴系因子(PLEKHM1、EPG5)。
(2)溶酶体酸化和水解酶(如 PPT1)活性对底物降解至关重要。
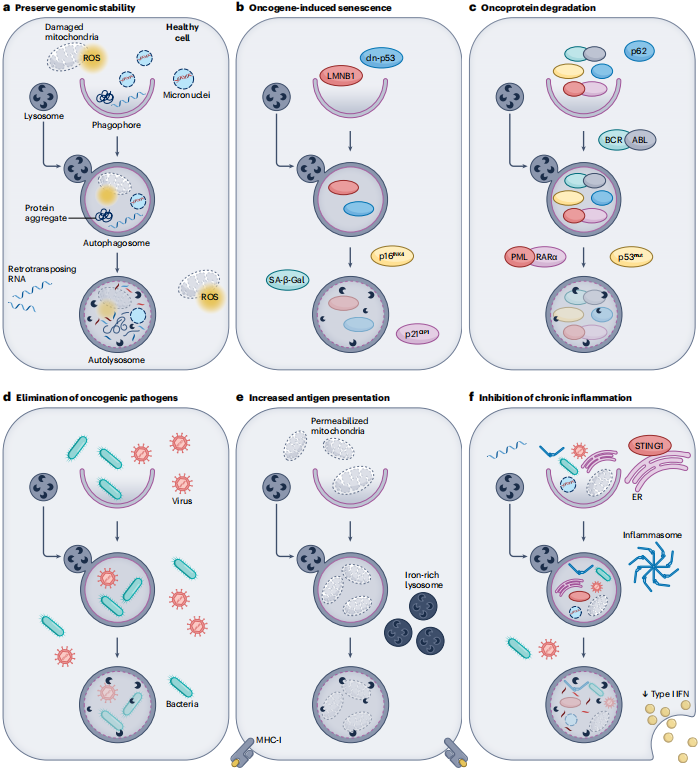
在正常细胞中,自噬通过六种主要机制抑制恶性转化:
| 机制 | 说明 |
|---|---|
| a. 维持基因组稳定性 | 清除产生活性氧(ROS)的受损线粒体、蛋白聚集体、微核(micronuclei)和逆转录转座子 RNA |
| b. 癌基因诱导的衰老 | 自噬参与癌基因诱导的细胞衰老,并与LMNB1降解及p16/p21、SA‑β‑Gal等衰老相关特征有关 |
| c. 致癌蛋白降解 | 选择性降解突变型 p53、p62、BCR‑ABL、PML‑RARα等 |
| d. 清除致癌病原体 | 通过异源自噬(xenophagy)清除致癌细菌和病毒 |
| e. 增强抗原呈递 | 线粒体自噬可通过促进溶酶体铁积累,进而上调MHC‑I分子表达,有利于新生恶性细胞被宿主免疫系统识别 |
| f. 抑制慢性炎症 | 降解可激活 PRR(模式识别受体)的内源性分子(微核、线粒体DNA、STING1等),抑制肿瘤促进性炎症 |
多种自噬相关基因的杂合缺失或组织特异性缺失可在特定小鼠模型中促进内源性肿瘤发生,包括Becn1、Ambra1以及Atg5/Atg7等。但这种效应具有明显的组织和遗传背景依赖性,不能简单认为所有自噬基因均属于经典抑癌基因。
文章还指出,在特定遗传背景下,Becn1杂合缺失可能产生与其经典肿瘤抑制作用不同的表型,例如在Tsc2+/-模型中反而阻断肿瘤发展,提示BECN1等自噬相关蛋白可能具有自噬非依赖性的功能。
非药物干预:热量限制(caloric restriction)、运动、禁食模拟饮食(FMD),这些干预在多种动物模型中显示出抗肿瘤或增敏作用,但其具体获益是否主要由自噬激活介导,目前仍缺乏充分的机制性证据。
潜在药物干预:雷帕霉素以及部分热量限制模拟物(如α‑酮戊二酸、白藜芦醇、阿司匹林)可能通过影响自噬及相关代谢通路产生抗肿瘤效应,但其具体作用机制并不一定完全依赖自噬。
关键挑战:人类组织中自噬通量(flux)的检测困难,现有研究多依赖静态标志物而非动态通量分析。此外,单纯观察LC3B‑II、LC3 puncta或p62/SQSTM1等静态指标,并不能充分判断自噬通量;因此,自噬活性与治疗获益之间的关联仍需要结合动态通量及功能性证据进行判断。
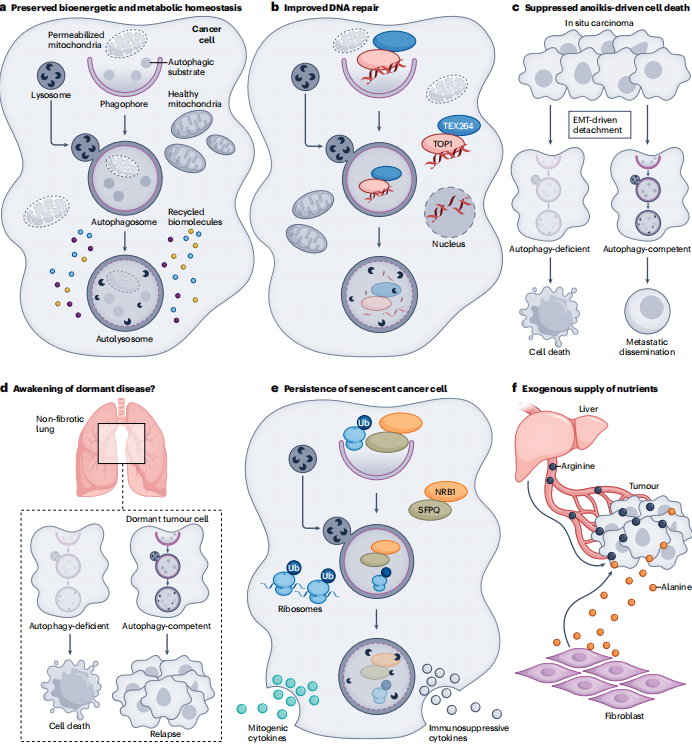
在已建立的肿瘤中,自噬通过以下机制支持肿瘤进展和治疗抵抗:
| 机制 | 说明 |
|---|---|
| a. 维持生物能量代谢 | 在营养/氧气匮乏时回收生物大分子,维持代谢稳态 |
| b. 促进 DNA修复 | 通过 TEX264等介导的选择性自噬清除 DNA损伤位点 |
| c. 抑制失巢凋亡(Anoikis) | 在 EMT过程中维持 detached癌细胞的存活,促进转移 |
| d. 维持休眠细胞 | 支持肿瘤干细胞和播散休眠肿瘤细胞存活,并可能影响其再激活和复发;但休眠细胞的后续扩增具有明显的情境依赖性 |
| e. 衰老癌细胞持续存在 | 维持衰老癌细胞的存活,使其持续分泌促瘤和免疫抑制因子 |
| f. 外源性营养供应 | 肿瘤微环境(如肝、成纤维细胞)通过自噬提供丙氨酸、精氨酸等 |
Atg5/7缺失在 KRAS/BRAF驱动的肺癌、胰腺癌等模型中显著抑制肿瘤进展。
但存在情境依赖性悖论:在肺纤维化背景下,自噬抑制反而可能加重转移负荷,部分与NBR1和PFKFB3积累以及休眠细胞再激活有关。
值得注意的是,Ambra1缺失在不同肿瘤阶段可能产生不同甚至相反的表型,进一步体现了自噬调控的情境依赖性。
CQ/HCQ的临床转化结果总体不理想。多项II期研究显示无获益或仅有边际获益,但并不能简单归结为“自噬抑制无效”,因为这些药物本身具有明显的非特异性作用。
原因分析:
- 这些药物高度非特异性,且抗癌效价低(EC50在 10–50 μM范围)。
- 抑制自噬可激活 KEAP1‑NRF2代偿通路,增强大胞饮作用和蛋白酶体降解。
- 许多抗肿瘤效应可能源于自噬非依赖机制(如血管正常化)。
这是文章最复杂的部分,因为自噬对免疫的影响是高度情境依赖的。
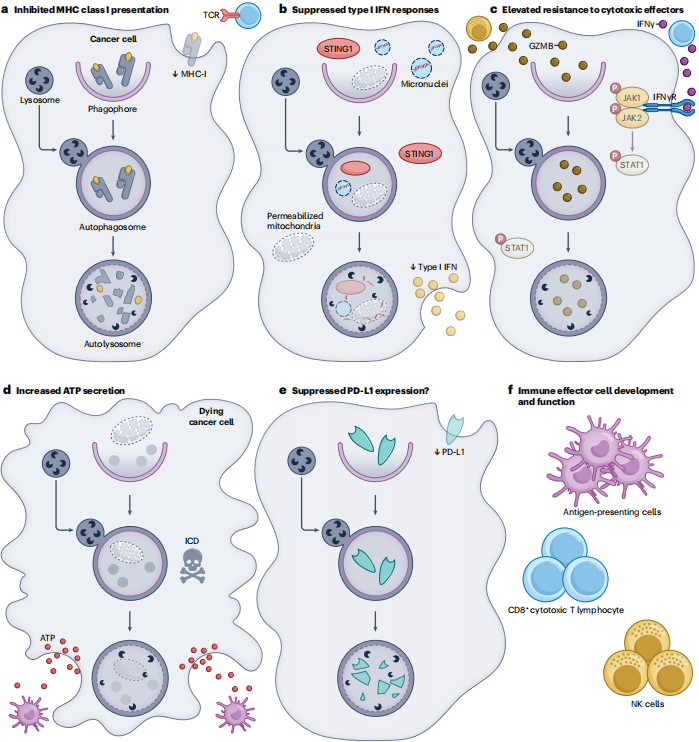
自噬在癌细胞中可通过以下机制抑制抗肿瘤免疫:
a. 抑制 MHC‑I呈递:自噬降解 MHC‑I分子,降低癌细胞对 CD8+ CTL的可见性。
b. 抑制 I型干扰素反应:通过清除或降解STING1、微核以及通透化线粒体等免疫刺激性结构,降低I型IFN/cGAS‑STING相关信号。
c. 增强对细胞毒效应物的抵抗:通过降解进入胞质的GZMB,并降低肿瘤细胞对IFNγ、TNF等细胞毒性/炎症性细胞因子的响应,从而增强对免疫效应的抵抗。
遗传学证据:
- Atg16l1缺失增强结直肠癌对 IFNγ和 TNF的敏感性。
- BECN1/ATG5/p62 敲低提高黑色素瘤对 CTL的敏感性。
- ATG4B 显性负性表达恢复 MHC‑I呈递,增强 PD‑1抑制剂疗效。
药理学证据:
- CQ/HCQ等溶酶体功能抑制剂,以及更具选择性的自噬通路抑制剂(如SB02024),在部分肿瘤模型中可增强ICI疗效。
- PPT1抑制剂DC661可增强部分肿瘤模型对PD‑1阻断的反应,其作用至少部分与改善I型IFN/STING相关信号有关,但具体分子机制尚未完全明确。
矛盾的是,自噬在某些情况下促进抗肿瘤免疫:
d. 免疫原性细胞死亡(ICD)中的 ATP释放:在部分化疗或放疗诱导的免疫原性细胞死亡(ICD)过程中,自噬对于ATP释放具有重要作用。在同基因结直肠癌小鼠模型中,肿瘤细胞ATG5/ATG7缺失可完全消除米托蒽醌的治疗效应,提示肿瘤细胞自噬对于某些免疫原性化疗的疗效至关重要。
e. PD‑L1降解:有证据表明自噬可将 PD‑L1靶向溶酶体降解(尽管仍需确认)。
f. 免疫效应细胞发育:自噬对 NK细胞、CD8+ T细胞、树突状细胞的发育和功能至关重要。
在髓系细胞中,LAP(一种非经典自噬)通过抑制 I型 IFN反应促进肿瘤免疫耐受。
Atg5/7/16l1缺失(影响自噬和 LAP)或 Rubcn/Nox2缺失(仅影响 LAP)均可限制肿瘤进展。
这意味着系统性自噬调节剂,实际影响的并不只是经典自噬,还可能同时影响LAP,从而改变肿瘤免疫微环境。
这篇综述是自噬与癌症领域的集大成之作,其最大贡献在于:系统阐述了自噬的情境依赖性双重角色,打破了"自噬总是好或总是坏"的简单化认知。
强调免疫微环境的重要性,指出系统性自噬调节必然同时影响癌细胞和免疫细胞。
梳理了从基础研究到临床转化的完整链条,既展示了新一代特异性药物(如 ULK1抑制剂、PPT1抑制剂)的前景,也诚实面对了生物标志物缺乏和代偿机制等现实障碍。
因此,肿瘤细胞、免疫细胞及其他宿主细胞中的自噬可能产生不同甚至相反的生物学效应,不能简单采用全身性同步抑制或激活的策略。
Autophagy modulation in cancer. Guilbaud E, et al. Nat Rev Drug Discov. 2026 Sep;25(9):701-722. doi: 10.1038/s41573-026-01449-9. Epub 2026 May 18. [PMID: 42151413]
| 靶标 | 货号 | 产品名称 | 反应种属 | 应用 |
|---|---|---|---|---|
| ULK1 | AMRe83955 | ULK1 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ICC |
| ULK2 | AMM81619 | ULK2 Mouse Monoclonal Antibody | Human,Mouse,Rat | WB,ELISA,FC |
| ATG13 | AMRe07284 | ATG13 (3F5) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,FC,IP |
| RB1CC1 | AMM82303 | RB1CC1 Mouse Monoclonal Antibody | Human | ELISA |
| AMPK α1 | AMRe21607 | AMPK α1 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA,IP |
| AMPK beta 1 | AMRe06843 | AMPK beta 1 (3Y15) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,FC,IP |
| AMPK gamma 1 | AMRe86981 | AMPK gamma 1 Rabbit Monoclonal Antibody | Human, Mouse, Rat | WB,FC,IP |
| VPS34 | AMRe87144 | VPS34 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC |
| BECN1 | AMM80962 | BECN1 Mouse Monoclonal Antibody | Human,Mouse | WB,IHC,ELISA,FC |
| ATG14L | AMM81601 | ATG14L Mouse Monoclonal Antibody | Human | IHC,ELISA |
| WIPI2 | APRab55662 | WIPI2 Rabbit Polyclonal Antibody | Human,Mouse,Rat | IHC,IF |
| DFCP1/ZFYV1 | APRab79429 | ZFYV1 Rabbit Polyclonal Antibody | Human,Mouse | WB |
| ATG3 | AMRe21180 | ATG3 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,IF,ELISA |
| Apg12 | AMRe83957 | Apg12(Atg12) Rabbit Monoclonal Antibody | Human | WB,IHC,ICC/IF,ICC,FC,IP |
| LC3B | AMRe21536 | LC3B Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA,IP |
| ATG4B | AMM82334 | ATG4B Mouse Monoclonal Antibody | Human, Mouse | WB,ELISA,FC |
| ATG5 | AMRe21348 | ATG5 Rabbit Monoclonal Antibody | Human,Mouse,Rat,Chicken | WB,IHC,IF,IP,ELISA |
| ATG16L1 | AMRe21136 | ATG16L1 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA,IP |
| ATG7 | AMRe21471 | ATG7 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA,IP |
| ATG10 | APRab07282 | ATG10 Rabbit Polyclonal Antibody | Human,Rat,Mouse | IHC,ICC/IF,ELISA |
| USP30 | APRab19673 | USP30 Rabbit Polyclonal Antibody | Human,Mouse,Rat | WB,ELISA |
| PINK1 | AMM85907 | PINK1 Mouse Monoclonal Antibody | Human, Mouse | WB,IHC |
| PRKN | AMM82302 | PRKN Mouse Monoclonal Antibody | Human | ELISA,FC |
| p62/SQSTM1 | AMRe15658 | p62/SQSTM1 (12N5) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,FC,IP |
| ATP6V1A | AMRe85328 | ATP6V1A Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,IP |
| EPG5 | APRab10509 | EPG5 Rabbit Polyclonal Antibody | Human,Rat,Mouse | WB,IHC,ICC/IF |
| PLEKHM1 | APRab57967 | PLEKHM1 Rabbit Polyclonal Antibody | Human,Mouse,Rat | WB |
| SNAP29 | AMRe18048 | SNAP29 (10N2) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,ICC/IF,FC,IP |
| STX17 | AMM83641 | STX17 Mouse Monoclonal Antibody | Human | WB,IHC |
| LAMP1 | AMRe87845 | LAMP1 Rabbit Monoclonal Antibody | Mouse | WB,IHC,ICC/IF,FC,IP |
| LAMP2 | AMRe01588 | LAMP2 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,IF,ELISA |
| PPT1 | AMM85956 | PPT1 Mouse Monoclonal Antibody | Human | WB,IHC,FC |
| SIRT3 | AMRe21475 | SIRT3 Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,ELISA,IP |
| SIRT5 | AMRe83856 | SIRT5 Rabbit Monoclonal Antibody | Human,Mouse | WB |
| SIRT6 | AMRe17919 | SIRT6 (10O9) Rabbit Monoclonal Antibody | Human,Mouse,Rat | WB,IHC,ICC/IF,IP |
相关产品