受体酪氨酸激酶抗体
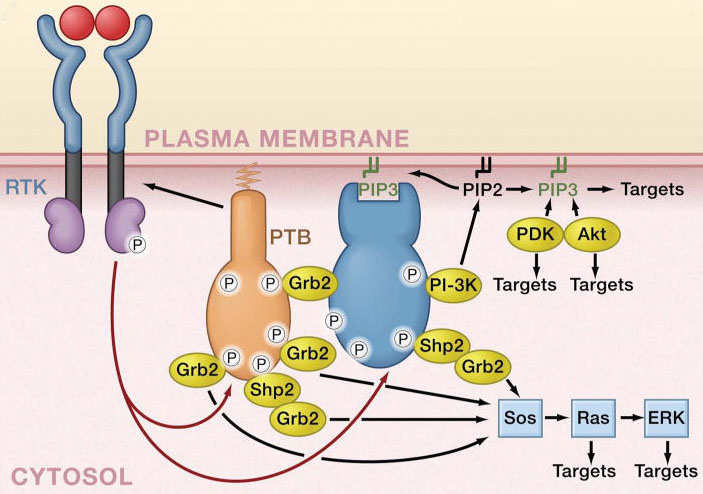
酪氨酸磷酸化在细胞信号传导中发挥关键作用。在癌症研究中,不受调控的酪氨酸激酶活性可通过产生不适当的增殖和存活信号来驱动恶性转化和肿瘤形成。特异识别磷酸化酪氨酸的抗体在这些研究中已成为极有价值的试剂。
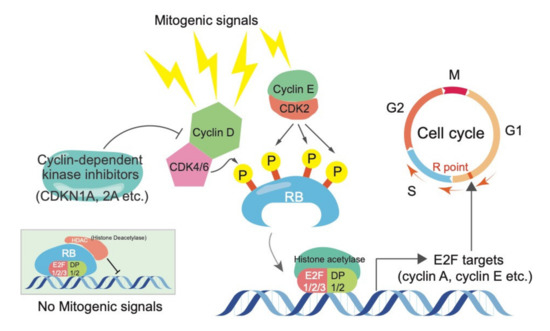
视网膜母细胞瘤肿瘤抑制蛋白 Rb 通过控制细胞周期 G1 期限制点的进程来调控细胞增殖。Rb 具有三个功能不同的结合结构域,可与关键的调控蛋白相互作用,包括 E2F 转录因子家族、c-Abl 酪氨酸激酶以及具有保守 LXCXE 基序的蛋白。CDK 介导的细胞周期依赖性磷酸化会抑制 Rb 与靶标的结合,从而允许细胞周期继续推进。Rb 的失活及随后的细胞周期推进,可能需要先由 cyclin D-CDK4/6 进行初始磷酸化,随后再由 cyclin E-CDK2 磷酸化。不同 CDK/cyclin 复合物的特异性已在体外实验中得到证实,而在体内 Ser780 的磷酸化需要 cyclin D1。
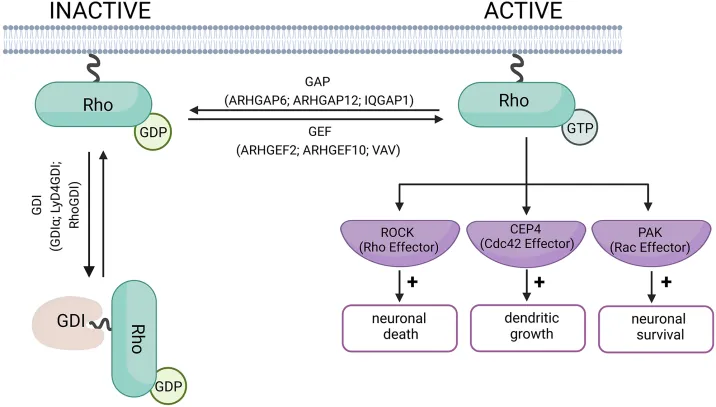
Rab 家族蛋白属于 GTP 酶,是单体 G 蛋白 Ras 超家族的成员。这些膜结合蛋白参与囊泡介导运输的诸多方面,包括初始囊泡形成、囊泡沿细胞骨架的运输,以及囊泡与靶膜的最终融合。Rab4 定位于早期内体/循环内体,是膜和蛋白分选/循环的关键调控因子。Rab4A 和 Rab4B 两种亚型均定位于相似的细胞区室,一般认为具有相似的功能。Rab4 在特殊的内体位点上与多种 Rab4 效应蛋白形成复合物,从而促进膜/蛋白的循环。Rab5 定位于质膜和早期内体,是早期内吞过程中囊泡运输的关键调控因子。Rab5-GTP 与 Rab5-GDP 之间的构象变化对其作为内吞多个步骤中限速调控因子的生物学功能至关重要。与 Rab4 类似,Rab5 也在特化的内体 Rab 结构域上与特定的 Rab5 效应蛋白相互作用,从而促进内体与质膜之间的循环。Rab7 与 Rab9 均位于晚期内体,但发挥不同的功能。Rab7 与 RIPL 效应蛋白结合,控制从早期内体向晚期内体及溶酶体的膜运输。Rab7 还参与调控生长受体的内吞运输与降解,以及吞噬体和自噬泡的成熟。Rab9 与其效应蛋白 p40 和 TIP47 相互作用,促进 MPR(甘露糖 6-磷酸受体)相关的溶酶体酶在晚期内体与反面高尔基网络之间的运输。Rab11(Rab11a 和 Rab11b 亚型)是核周、质膜和高尔基区室内体循环的关键调控因子。尽管存在一定重叠,Rab11a 与 Rab11b 在细胞分布和功能作用上仍有明显差异。
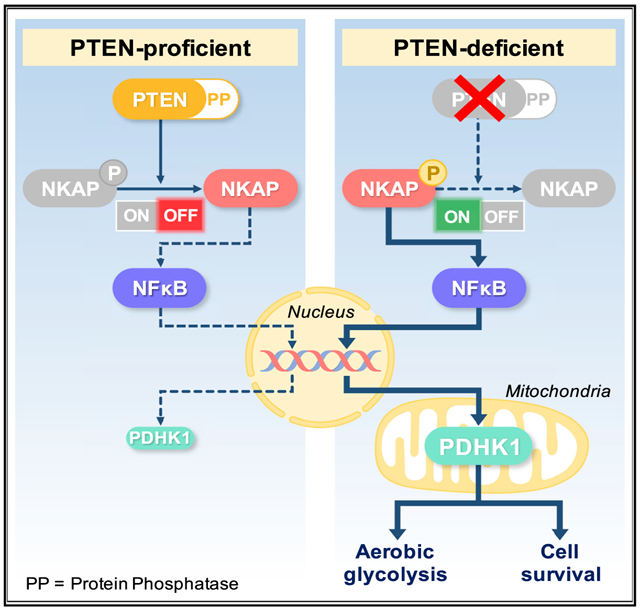
PTEN(第 10 号染色体缺失的磷酸酶与张力蛋白同源物),也称为 MMAC(多种晚期癌症中突变)磷酸酶,是一种与多种人类癌症相关的肿瘤抑制因子。PTEN 编码一个 403 个氨基酸的多肽,最初被描述为一种双特异性蛋白磷酸酶。PTEN 的主要底物是由磷酸肌醇 3-激酶(PI3K)激活产生的肌醇磷脂。PTEN 是 PI3K/Akt 信号通路的主要负调控因子。PTEN 具有一个羧基端非催化调节结构域,包含三个磷酸化位点(Ser380、Thr382 和 Thr383),这些位点调控 PTEN 的稳定性并可能影响其生物学活性。PTEN 调控 p53 蛋白的水平和活性,并参与趋化过程中的 G 蛋白偶联信号传导。
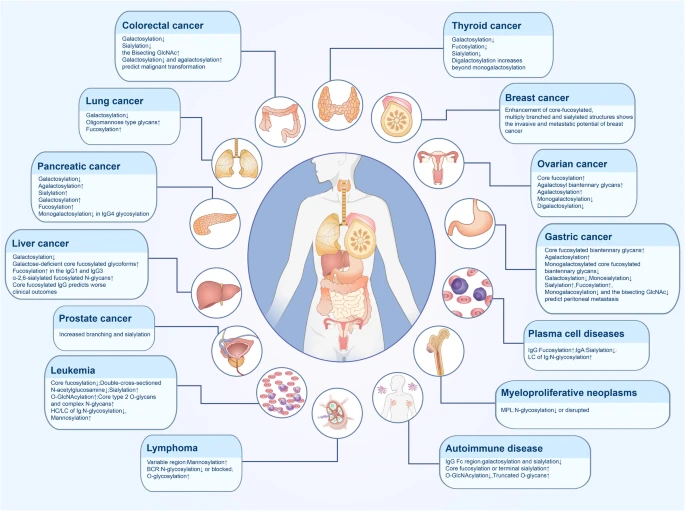
一种独特的蛋白质糖基化形式——β-D-N-乙酰葡糖胺(GlcNAc)基团可以添加到蛋白质的丝氨酸或苏氨酸残基上。这与其他糖基化形式不同,因为它通常是单个基团,而非更常见的复杂分支糖链。据认为,这些修饰发生在一个更动态的循环中,类似于磷酸化修饰。GlcNAc 修饰的蛋白质存在于细胞质和细胞核中。它们通过特异性的 O-GlcNAc 转移酶(OGT)以及可被 Thiamet-G(TMG)抑制剂抑制的 GlcNAcase 活性来调控。由于在电离和碎裂过程中 GlcNAc 基团的丢失,对该修饰的质谱分析一直很复杂,但电子转移解离(ETD)等方法和技术正在为研究这些修饰开辟新的途径。O-GlcNAc 可能在许多细胞过程中发挥重要作用,包括代谢、生长、形态发生、凋亡和转录,并且可能在癌症中起关键作用。
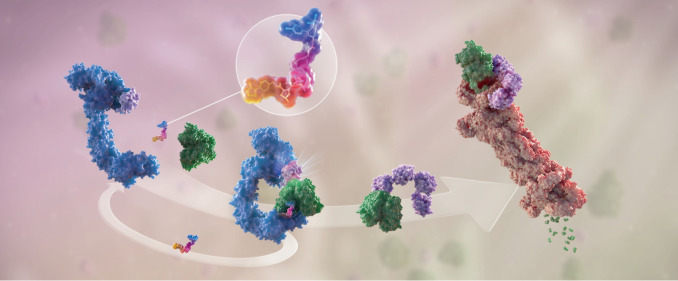
PROTAC(蛋白水解靶向嵌合体)是一种利用一类小分子来靶向特定蛋白质进行降解的技术。这些小分子是异源双功能的,由通过连接臂连接的两个蛋白结合部分组成。分子的一部分结合靶标蛋白(POI),另一部分结合 E3 泛素连接酶,使 E3 连接酶靠近 POI,从而介导泛素化并伴随蛋白降解。首个成功的 PROTAC 研究使用嵌合 PROTAC-1 分子募集 β-TrCP E3 连接酶,指导 MetAP2 的泛素化和降解。目前已鉴定出 600 多种 E3 连接酶,但只有少数已被成功开发用于 PROTAC 降解靶标蛋白。其中,基于 CRBN 和 VHL 的 PROTAC 已被广泛探索并成功应用于多种疾病治疗。E3 连接酶 MDM2、c-IAP 和 XIAP 在使用 PROTAC 策略治疗癌症方面成果丰硕。利用 KEAP1 E3 连接酶的 PROTAC 设计已被开发用于降解 BRD3、BRD4 和 Tau。KEAP1 是 PROTAC 家族中另一个有前景的成员。